Lophophora williamsii

Lophophora williamsii
Nazwa i zasięg
Przyjęta nazwa to Lophophora williamsii (Lem. ex J.F.Cels) J.M.Coult. (dawniej m.in. Echinocactus williamsii, Anhalonium williamsii i Mammillaria williamsii). Bieżące POWO włącza tu również nazwy L. lewinii, L. echinata oraz L. jourdaniana. Podaje naturalny zasięg od południowo-zachodniego i południowego Teksasu po północno-wschodni Meksyk, z przedłużeniem ku Jalisco. [2-WWW] [2-WWW]
Flora of North America opisuje stanowiska w zaroślach pustyni Chihuahua oraz kolczastych zaroślach tamaulipańskich, zwykle na wapiennych wzgórzach lub w ich sąsiedztwie. Podany zakres wysokości wynosi 100–1500 m, wyjątkowo do 1900 m. Część nadziemna leży niemal na poziomie powierzchni gleby. [Zimmerman i Parfitt 2003c]
W Teksasie gatunek zajmuje dwa odmienne regiony. Na południu występuje w kolczastych zaroślach tamaulipańskich, a na zachodzie w roślinności pustyni Chihuahua. Oba układy łączy wapienne podłoże. W badaniu sześciu populacji z 2019 r. zachodnie stanowiska były wyżej położone, suchsze i chłodniejsze, zwłaszcza nocą. Stwierdzona różnica klimatu współwystępowała z różnicą wielkości roślin, a wpływu poszczególnych czynników nie rozdzielono doświadczalnie. [Ermakova i wsp. 2021, s. 150, 154–158]
Korpus i kwitnienie
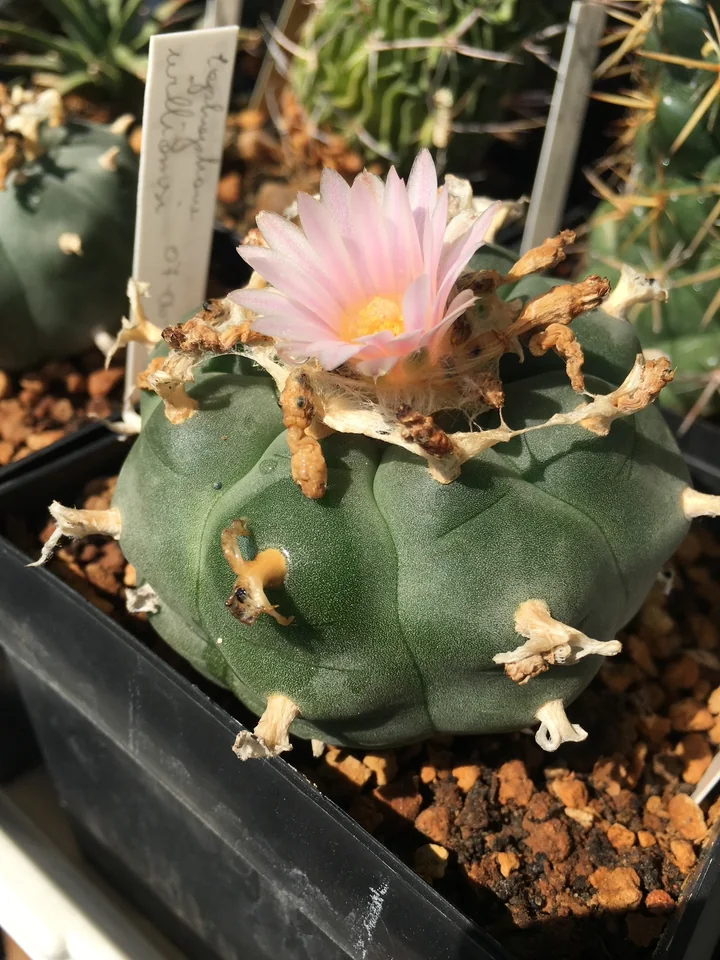
Pęd jest spłaszczony albo kopulasty, z głęboko zagłębionym wierzchołkiem i szerokimi, łagodnie zaokrąglonymi żebrami. Rośliny pozostają pojedyncze lub tworzą rozgałęzienia. Skórka jest miękka, a dorosłe areole mają pęczki włosków. Mięsisty korzeń ma szeroko marchwiowaty kształt, w opisie flory długość 6–12 cm. Wolny wzrost łączy się z wieloletnim trwaniem osobnika. [Zimmerman i Parfitt 2003c]
Wewnętrzne listki okwiatu mają jasne, białawe do zielonkaworóżowych brzegi i ciemniejsze pasy środkowe. W obszarze opisanym przez florę kwitnienie przypada głównie na marzec–maj, z przedłużeniem do września. Owoce mogą dojrzewać gwałtownie dopiero wiele miesięcy po kwitnieniu, nawet po około roku. [Zimmerman i Parfitt 2003c]
Owoce są zamknięte, słabo soczyste, a po dojrzeniu szybko wysychają i kurczą się. Czarne nasiona mają wypukłe komórki łupiny. W opisie rodzaju owoce mierzą 11–25 × 4–5 mm, a nasiona 1–1,5 × 1–1,2 mm. To zakresy podane dla rodzaju w ujęciu Flora of North America z 2003 r., obejmującym wówczas dwa gatunki. [Zimmerman i Parfitt 2003c, opis rodzaju i gatunku w FNA, s. 241–243]
Podziemny pęd i korzeń
Badanie histologiczne Terry’ego i Mausetha objęło pięć roślin różnej wielkości, w tym dwa młode okazy i trzy dorosłe. Większość materiału pochodziła z południowego Teksasu. W podziemnym odcinku pędu stwierdzono wiązki przewodzące w korze pierwotnej oraz miękiszowy rdzeń. W korzeniu brakowało takich wiązek korowych, a centrum zajmowały elementy metaksylemu, czyli później różnicującego się drewna pierwotnego. Zewnętrzny kształt zgrubienia nie wyznaczał wyraźnie granicy obu organów. [Terry i Mauseth 2006, s. 571–586]
U trzech dorosłych okazów przejście pędu w korzeń znajdowało się kilka centymetrów pod powierzchnią gleby. Autorzy powiązali jego zagłębianie z działaniem korzeni kurczliwych. Opisali również powstawanie nowych rozgałęzień z areoli zachowanego podziemnego pędu po utracie części wierzchołkowej. Zdolność odrastania jest związana z zachowaniem żywych merystemów, czyli tkanek tworzących nowe organy. [Terry i Mauseth 2006, s. 573, 579, 588–591]
Osłona sąsiednich roślin
W badaniu meksykańskich zarośli rozetowych z 2022 r., obejmującym dziesięć powierzchni po 100 m², 97,7% odnotowanych osobników znajdowało się pod koronami innych roślin. Pod osłoną mierzono niższą temperaturę powierzchni gleby i mniejsze natężenie promieniowania, a kaktusy częściej zajmowały północną część koron. Wynik opisuje przestrzenne zależności w badanej społeczności roślinnej. [Schwertner-Charão i wsp. 2022]
Wielkość roślin i struktura populacji
W maju i lipcu 2019 r. Ermakova i współautorzy przeprowadzili pomiary sześciu populacji teksańskich. Na 121 losowo rozmieszczonych transektach o wymiarach 25 × 4 m odnotowali 294 rośliny. Kaktusy występowały tylko na 14 transektach, co wskazuje na silne skupienie w przestrzeni. W badanej próbie 77% roślin miało pojedynczą koronę, 14% dwie, a pozostałe trzy do siedmiu. Korona oznacza tu widoczną ponad ziemią, fotosyntetyzującą część pędu. [Ermakova i wsp. 2021, s. 151–157]
Rośliny z zachodniego Teksasu miały istotnie większą oszacowaną objętość części nadziemnej. Wynik oparto na średnicach koron, przyjmując ich kształt zbliżony do półkuli i sumując objętości rozgałęzień. Liczba koron nie odróżniała obu regionów. Roślina wielokoronowa może powstać po uszkodzeniu, w toku starzenia albo jako część rozwoju klonalnego. Sam wygląd powierzchni nie rozstrzyga, czy sąsiednie korony mają wspólną część podziemną. [Ermakova i wsp. 2021, Ermakova i wsp., s. 152, 155–158. Terry, s. 332–334] [Terry 2011, Ermakova i wsp., s. 152, 155–158. Terry, s. 332–334]
Regeneracja i długotrwałe następstwa uszkodzeń
Po utracie wierzchołka nadziemne korony mogą odrastać z pąków podziemnego pędu. Obserwacje anatomiczne obejmowały również rozgałęzienia wytwarzające własne korzenie przybyszowe. Stopniowo uniezależniały się od rośliny macierzystej, której resztki następnie zamierały. W ten sposób powstają osobne jednostki klonalne. Liczba widocznych koron i liczba nowych osobników pochodzących z nasion opisują odmienne procesy biologiczne. [Terry i Mauseth 2006, s. 567–581]
W doświadczeniu rozpoczętym w 2008 r. na 100 roślinach jednego stanowiska południowego Teksasu porównano kontrolę z roślinami pozbawionymi korony. Po dwóch latach odrosty miały większą liczbę mniejszych koron i istotnie mniejszą łączną objętość części nadziemnej. Kolejne obserwacje wykazały osłabienie wzrostu oraz przeżywania przy ponownym uszkadzaniu co dwa lata. Przy pojedynczym uszkodzeniu odbudowa wielkości trwała przez następne lata. Wyniki rozwinięto w osobnym artykule o biologicznym koszcie regeneracji. [Terry i wsp. 2011, Terry i wsp. 2011, s. 664–670. 2012, s. 568–575. 2014, s. 542–549] [Terry i wsp. 2012, Terry i wsp. 2011, s. 664–670. 2012, s. 568–575. 2014, s. 542–549] [Terry i wsp. 2014, Terry i wsp. 2011, s. 664–670. 2012, s. 568–575. 2014, s. 542–549]
Uszkodzenie przez mróz i odrost w szklarni
Terry opisał pojedynczy okaz z zachodniego Teksasu, którego nadziemna korona zaschła po długotrwałym mrozie 2–5 lutego 2011 r., występującym po pięciu miesiącach suszy. Przewieziona do szklarni roślina zachowała żywą część podziemną. Po ośmiu tygodniach pojawiły się trzy odrosty, a po jedenastu czwarty. Praca dokumentuje możliwość regeneracji po zniszczeniu wierzchołka. Miejscowych temperatur przy kaktusie nie mierzono, a obserwacja jednego okazu nie ustala progu mrozoodporności gatunku ani temperatury zimowania roślin w doniczce. [Terry 2011, s. 330–334]
Rozmnażanie w kulturach in vitro
Cortés-Olmos i współautorzy ocenili osiem wariantów pożywki do kiełkowania nasion. Zmieniali stężenie soli Murashige’a i Skooga, pełne lub połowiczne, sacharozy, 20 lub 30 g l⁻¹, oraz agaru, 8 lub 10 g l⁻¹. Po 49 dniach uzyskano 67–75% kiełkowania. Istotne różnice między wariantami dotyczyły pierwszych 14 dni, gdy nasiona szybciej reagowały na niektóre warunki. [Cortés-Olmos i wsp. 2018, abstrakt]
Następny etap trwał 105 dni i obejmował porównanie stężeń sacharozy 15, 30 i 45 g l⁻¹. Przy 15 g l⁻¹ rośliny osiągały największe rozmiary i największą liczbę areoli. Autorzy badali wzrost bez dodanych regulatorów wzrostu. Podane proporcje dotyczą pożywek do kultur sterylnych. [Cortés-Olmos i wsp. 2018, abstrakt]
Genom mitochondrialny
Pierwsze pełne złożenie genomu mitochondrialnego objęło 2 422 778 par zasad. Sekwencję zapisano w pięciu liniowych kontigach, czyli ciągłych odcinkach złożonych z odczytów DNA. Ten zapis opisuje wynik rekonstrukcji sekwencji. Rzeczywiste konfiguracje cząsteczek w żywych mitochondriach wymagają dalszej kontroli. Materiał pochodził z jednego okazu o nieustalonej naturalnej populacji pochodzenia, utrzymywanego w laboratorium w Pekinie. [Liu i wsp. 2026]
Siedlisko i ochrona populacji
Wśród udokumentowanych zagrożeń w Teksasie znajdują się niszczenie zarośli i podziemnych części roślin przy przekształcaniu gruntów, rozwój infrastruktury oraz pozyskiwanie dzikich okazów. Badanie z 2021 r. odnosi się do sześciu wybranych miejsc, w których obecność gatunku była znana wcześniej. Określa strukturę tych populacji, a pełna ocena zmian liczebności wymaga także pomiarów przeżywania, wzrostu i pojawiania się siewek w kolejnych latach. [Ermakova i wsp. 2021, s. 150, 157–158]
Zamieszczona w 2019 r. relacja Cactus Conservation Institute uzupełnia serię eksperymentalną obserwacjami z lat 2018–2019. Autorzy stwierdzili nieplanowane pozyskanie części oznakowanych roślin i usuwanie osłaniających je zarośli. Dalszy przebieg obserwacji dotyczył już populacji poddanej dodatkowej presji. Jest to internetowy raport terenowy, odrębny od recenzowanych prac z lat 2011–2014. [25-WWW]
Powiązane artykuły
Materiały z archiwum autora
Gatunek występuje również w prywatnym archiwum materiałów Konrada Szychowskiego. [Kaktusy i Inne 2006b, s. pliku 22, 24] [Romulski 2006b, s. pliku 37] [U.S. Fish and Wildlife Service 2003, s. pliku 17]
Synonimy i nazwy w literaturze
Echinocactus williamsii · Anhalonium williamsii · Mammillaria williamsii · Lophophora lewinii · Ariocarpus williamsii · Anhalonium lewinii · Echinocactus lewinii · Echinocactus williamsianus · Lophophora echinata · Lophophora jourdaniana · Lophophora pentagona · Lophophora pluricostata · Lophophora williamsii var. texana · Lophophora williamsii var. lewinii · Lophophora williamsii var. decipiens [2-WWW]