Przekrój poprzeczny pędu
Plansza przedstawia organizację mięsistego pędu. Zieleń przy obwodzie oznacza obszar asymilacyjny, a jasna tkanka położona głębiej — obszar magazynowania wody. Układ przewodzący otacza rdzeń. [Mauseth 2006]
To model budowy. Proporcje tkanek, ciągłość warstwy podskórkowej i rozmieszczenie dodatkowych wiązek w korze różnią się między kaktusami.
Powiększ planszę ↗Sukulentyzm i podział funkcji w pędzie
Zielona powierzchnia kaktusa jest częścią łodygi, która u wielu gatunków przejęła znaczną część fotosyntezy prowadzonej u innych roślin przez liście. Wnętrze pędu zawiera rozbudowane żywe tkanki zdolne do magazynowania wody. Taka organizacja pozwala uniezależnić bieżące funkcjonowanie rośliny od każdej krótkiej przerwy w opadach. Nie oznacza jednak nieograniczonego zapasu. Podczas suszy stopniowo zmieniają się uwodnienie tkanek, ich objętość i aktywność fizjologiczna. [Mauseth 2006]
W przekroju pędu wyróżnia się skórkę, często także wzmacniającą strefę podskórkową, rozbudowaną korę pierwotną oraz położony głębiej układ przewodzący i rdzeń. Kora pierwotna jest tu nazwą tkanki, a nie zdrewniałej okrywy znanej z pni drzew. Jej część zewnętrzna zawiera chloroplasty, natomiast bardziej wewnętrzne obszary uczestniczą przede wszystkim w magazynowaniu wody. Granice i proporcje tych stref zależą od gatunku, wieku i typu pędu. [Mauseth 2006]
Rodzina kaktusowatych obejmuje również rośliny z dobrze rozwiniętymi liśćmi oraz epifity o stosunkowo cienkich, spłaszczonych pędach. Jeden przekrój kulistego kaktusa nie może więc przedstawiać całej jej różnorodności. Jest modelem wybranej organizacji, przydatnym do porównywania roślin, a nie uniwersalnym wzorcem każdego przedstawiciela Cactaceae. [Mauseth 2006]
Nazwy części kaktusa
| Element | Co oznacza | Jak go interpretować |
|---|---|---|
| Pęd | Łodyga wraz z liśćmi i pąkami, nawet gdy liście są silnie zredukowane | Zielony korpus nie obejmuje korzeni. Określenia pęd i łodyga bywają używane skrótowo, lecz nie są całkowicie równoważne. |
| Wierzchołek wzrostu | Obszar z merystemem wierzchołkowym pędu | Powstają tu nowe odcinki osi i zawiązki organów. Nie jest nim każda areola. |
| Areola | Wyspecjalizowany krótkopęd z własnym obszarem merystematycznym | Może tworzyć ciernie, włoski, pędy boczne lub kwiaty. Nie jest pojedynczym cierniem ani otworem w skórce. |
| Żebro | Podłużna wypukłość łodygi | Geometria ułatwia zmianę objętości uwodnionego pędu. Liczba żeber może zmieniać się podczas wzrostu. |
| Brodawka | Wyodrębniona wypukłość powierzchni pędu | Może być związana z areolą. Jej układ i bruzdy mają znaczenie w opisach rodzajów. |
| Aksylla | Pacha, w opisach mammillarii zagłębienie między brodawkami | Miejsce kwitnienia może być oddzielone od szczytowej części areoli niosącej ciernie. |
| Cierń radialny | Cierń promieniście rozłożony przy obwodzie areoli | Zwykle leży bliżej powierzchni pędu. Różnica wobec ciernia centralnego dotyczy położenia, nie tylko długości. |
| Cierń centralny | Cierń rozwijający się bliżej środka zespołu cierni | Często bardziej odstaje od powierzchni. Może być prosty albo haczykowaty. |
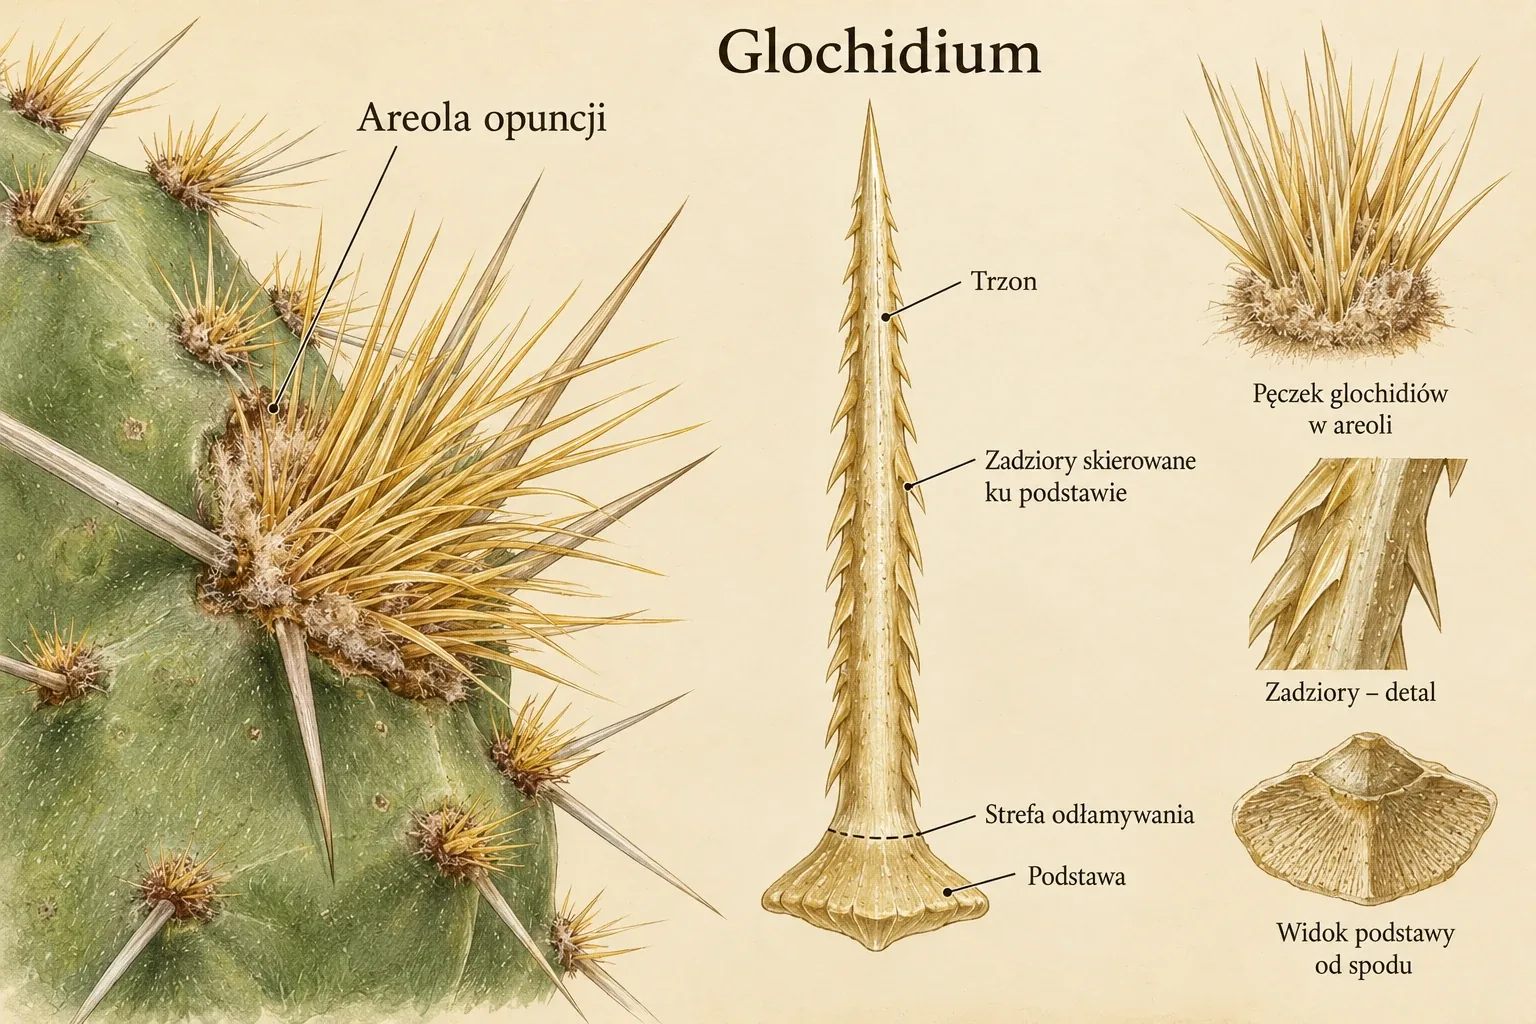
| Glochidium | Drobny cierń z zadziorami, typowy dla opuncjowych | Łatwo odłącza się i wbija w skórę. Glochidia nie są delikatnymi włoskami, których można bezpiecznie dotykać. |
| Włoski areoli | Trichomy, często tworzące wełnistą okrywę | Należy je odróżniać od cienkich lub pierzastych cierni. Podobny wygląd nie dowodzi wspólnej budowy. |
| Człon | Odcinek pędu oddzielony wyraźnym przewężeniem | Płaski człon opuncji lub szlumbergery jest częścią łodygi, nie liściem. |
| Skórka i kutykula | Tkanka okrywająca oraz jej zewnętrzna warstwa ochronna | Aparaty szparkowe należą do skórki. Kutykula ogranicza utratę wody, ale nie uszczelnia rośliny całkowicie. |
| Miękisz asymilacyjny | Żywe komórki z chloroplastami | Prowadzi fotosyntezę. Leży zwykle w zewnętrznej części kory pierwotnej pędu. |
| Tkanki magazynujące wodę | Żywe tkanki utrzymujące zapas wody | Nie są pustą cysterną. Funkcja magazynująca i asymilacyjna mogą częściowo zachodzić na siebie. |
| Drewno i łyko | Tkanki przewodzące | Drewno przewodzi wodę i substancje mineralne, łyko przede wszystkim związki organiczne między miejscami ich produkcji i zużycia. |
| Szyjka korzeniowa | Strefa przejścia pędu w system korzeniowy | Jej położenie pomaga ocenić właściwą głębokość posadzenia i miejsce uszkodzeń. |
| Korzeń główny i korzenie boczne | Oś pochodzenia zarodkowego i jej odgałęzienia | U sadzonki korzenie powstałe z pędu są przybyszowe. Duży korzeń nie musi być korzeniem głównym. |
| Korzeń spichrzowy | Zgrubiały korzeń magazynujący zasoby | Nie jest podziemną łodygą. Kaktusy różnią się udziałem korzeni i pędów w magazynowaniu wody. |
Greckie i łacińskie człony spotykane w nazwach zebrano w pięciu tabelach nazewnictwa. Słownik opisuje język, natomiast powyższe zestawienie pomaga rozpoznać organy i tkanki. [Mauseth 2006] [Dubrovsky i North 2002]

Żebra, brodawki i ukształtowanie pędu
Dwa rzędy paneli zestawiają kierunek przebiegu żeber, ich liczbę, szerokość i stopień rozdzielenia na brodawki. Te cechy pomagają opisywać wygląd pędu i zmiany zachodzące podczas wzrostu. [Mauseth 2006] [Hernández-Hernández i wsp. 2011]
Podpisy planszy łączą różne kryteria opisu. Członowanie całego pędu nie jest typem żebra, a brodawki nie tworzą jednego prostego szeregu ewolucyjnego od żeber. Nie traktuj tego zestawienia jako formalnej klasyfikacji.
Powiększ planszę ↗Areola i organizacja wzrostu
Areola jest wyspecjalizowanym obszarem związanym z pąkiem pachwinowym i silnie skróconym pędem. Zwykle skupia ciernie i włoski, a jej merystem może uczestniczyć w tworzeniu kolejnych organów. Merystem to tkanka, której komórki zachowują zdolność do podziałów i dają początek nowym częściom rośliny. Zależnie od gatunku i fazy rozwoju z areoli mogą powstawać pędy boczne albo struktury kwiatowe. [Mauseth 2006]
Widoczna kępka cierni jest zatem śladem określonej organizacji rozwojowej. Nie należy utożsamiać areoli wyłącznie z miejscem, w którym tkwią ciernie. U roślin o cierniach zredukowanych lub niewidocznych areole nadal pozostają elementem budowy pędu. To właśnie ich obecność pomaga odróżnić kaktus od podobnie wyglądającego sukulenta należącego do innej rodziny. [Mauseth 2006]
U mamilarii organizacja areoli jest szczególnie wyraźna. Część cierniotwórcza znajduje się na szczycie brodawki, a aktywność związana z kwiatami lub odrostami występuje przy jej nasadzie. W kolekcjonerskich opisach ten rejon określa się jako pachę między brodawkami, czyli pachwinę. Przestrzenne rozdzielenie funkcji nie oznacza, że kwiat rozwija się w przypadkowym miejscu poza układem rozwojowym rośliny. [Mauseth 2006]

Struktury rozwijające się w areoli
Areola jest silnie skróconym pędem bocznym. Plansza zestawia młodą areolę, powstawanie cierni, rozwój pąka kwiatowego i areolę z dojrzałymi cierniami. Panele pomagają rozróżnić struktury, ale nie wyznaczają obowiązkowej kolejności ich pojawiania się. U części kaktusów wytworzenie cierni i kwitnienie dzieli okres spoczynku merystemu. [Mauseth 2006]
Podpis „merystem” odnosi się do tkanki twórczej, a nie całej widocznej poduszeczki areoli. Podziałki 5 mm nie powiązano z oznaczonym gatunkiem ani pomiarem. Rycina nie dokumentuje przebiegu doświadczenia ani czasu rozwoju.
Powiększ planszę ↗Pochodzenie cierni i włosków
Ciernie kaktusów są organami pochodzenia liściowego, rozwijającymi się w obrębie krótkopędu. W opisie rozwojowym porównuje się je także z silnie zmodyfikowanymi łuskami pąkowymi. Włoski pokrywające areolę są natomiast wytworami skórki. Obie struktury mogą tworzyć wspólną osłonę, ale ich podobny wygląd nie oznacza takiego samego pochodzenia. [Mauseth 2006] [Silva i wsp. 2020]
Również cierń kaktusa i kolec róży nie są tym samym organem. Kolec jest wyrostkiem powierzchniowym, podczas gdy cierń kaktusa ma związek z programem rozwojowym liścia. Nie wystarczy jednak narysować przewodu wewnątrz jednego z nich, aby wyjaśnić różnicę. Mauseth w przeglądzie z 2006 roku wskazywał brak opisanych tkanek przewodzących i prokambium w zwykłych cierniach. Późniejsze badanie Silva i wsp. z 2020 roku wykazało jednak drewno i łyko w nasadzie wyspecjalizowanych glochidiów wydzielniczych dwóch gatunków opuncjowych. Rozpoznanie pochodzenia struktury opiera się na jej rozwoju. Obecność albo brak wiązki nie stanowią uniwersalnego kryterium dla wszystkich przekształceń cierni. [Mauseth 2006] [Silva i wsp. 2020]
Młody cierń ma przy podstawie strefę podziałów i wydłużania. W miarę dojrzewania większość jego komórek tworzy twardą, zlignifikowaną strukturę. Ciernie promieniste i centralne mogą różnić się kształtem, grubością i kierunkiem wzrostu. Te cechy są przydatne w oznaczaniu roślin, ale trzeba je oceniać razem z innymi właściwościami oraz wiekiem badanego przyrostu. [Mauseth 2006] [Silva i wsp. 2020]

Areola i rozwój cierni
Po lewej pokazano położenie cierni promienistych i centralnych. Środkowy panel łączy areolę z tkankami pędu, a prawy przedstawia wydłużone, twarde komórki dojrzałego ciernia. Areola jest skróconym pędem, z którego rozwijają się także włoski i inne struktury. [Mauseth 2006] [Silva i wsp. 2020]
Informacja o braku drewna i łyka dotyczy zwykłych cierni. Wyspecjalizowane glochidia wydzielnicze opisane u dwóch gatunków mają unaczynioną nasadę — pokazano je na osobnej planszy.
Powiększ planszę ↗Skórka, kutykula i strefa podskórkowa
Skórka oddziela wnętrze pędu od otoczenia. Pokrywająca ją kutykula i woski ograniczają utratę wody, lecz nie tworzą zupełnie nieprzepuszczalnej powłoki. Wymiana gazowa odbywa się przede wszystkim przez aparaty szparkowe. Ich rozmieszczenie jest cechą anatomiczną, natomiast stopień otwarcia zmienia się w odpowiedzi na stan rośliny i warunki środowiska. [Mauseth 2006]
U wielu kaktusów pod skórką występuje hypoderma, czyli strefa podskórkowa o komórkach z pogrubiałymi ścianami. Uczestniczy w ochronie i mechanice powierzchni pędu. Jej rozwój jest jednak zróżnicowany. Niektóre drobne kaktusy mają ją słabo wykształconą lub nie tworzą wyraźnej warstwy tego rodzaju. Również grubość kutykuli nie daje podstaw do prostego uszeregowania wszystkich gatunków według odporności na suszę. [Mauseth 2006]
Zielona barwa widoczna przez skórkę pochodzi głównie z chloroplastów leżących głębiej. Na wygląd powierzchni wpływają także woski, włoski i barwniki. Nalot woskowy jest częścią biologicznej powierzchni rośliny. Jego obecność należy odróżniać od osadu pozostawionego przez wodę czy od objawów zasiedlenia przez szkodniki. [Mauseth 2006]
Tkanki asymilacyjne i magazynujące wodę
W zewnętrznej części kory pierwotnej leży miękisz asymilacyjny. Dociera do niego światło, a komórki zawierające chloroplasty prowadzą fotosyntezę. Bardziej wewnętrzne tkanki mają większy udział w magazynowaniu wody. Jest ona utrzymywana w żywych komórkach, w znacznej części w ich wakuolach. Pęd nie jest pustym zbiornikiem z otaczającą go zieloną ścianką. [Mauseth 2006]
Różne strefy nie muszą tracić wody z jednakową szybkością. Tkanki magazynujące mogą zmniejszać objętość, pomagając podtrzymywać uwodnienie warstw prowadzących fotosyntezę. Zależność między budową komórek a ich zachowaniem przy wysychaniu jest jednym z powodów, dla których dwa podobnie duże kaktusy mogą inaczej reagować na długotrwały niedobór wody. [Mauseth 2006]
W tkankach wielu gatunków występują również komórki zawierające śluzy. Są to substancje bogate w polisacharydy, które silnie wiążą wodę. Ich obecność wpływa na właściwości uwodnionych tkanek, jednak udział śluzów i rozmieszczenie komórek śluzowych są zmienne. Nie każdą cechę pojedynczego gatunku należy przenosić na całą rodzinę. [Mauseth 2006]
Układ przewodzący w grubym pędzie
Drewno przewodzi przede wszystkim wodę i składniki mineralne, a łyko uczestniczy w rozprowadzaniu produktów asymilacji. W grubym pędzie sama odległość między zieloną powierzchnią a centralnym układem przewodzącym staje się istotnym problemem. Transport na dużą odległość nie może opierać się wyłącznie na powolnym przemieszczaniu substancji między kolejnymi komórkami. [Mauseth 2006]
U wielu kaktusów dodatkowe wiązki korowe tworzą sieć w obrębie rozbudowanej kory pierwotnej. Zbliżają tkanki przewodzące do stref aktywnych metabolicznie i ułatwiają zaopatrzenie dużej objętości żywego pędu. Dlatego schemat z jednym przewodem biegnącym środkiem kaktusa jest niewystarczający. W uproszczonym przekroju trzeba odróżnić centralny układ wiązek od dodatkowej sieci w korze. [Mauseth 2006]
Znaczenie mechaniczne drewna również jest zróżnicowane. Wysoki, kolumnowy pęd wymaga innego podparcia niż niewielka roślina kulista. Nie każdy kaktus jest więc równie miękki wewnątrz, a pokrój kolumnowy nie polega jedynie na wydłużeniu struktury charakterystycznej dla małej rośliny kulistej. [Mauseth 2006]
Żebra, brodawki i zmiana objętości
Po nawodnieniu pęd zwiększa objętość, a podczas suszy kurczy się. Żebra pozwalają częściowo kompensować te zmiany przez rozchylanie lub zbliżanie fałdów powierzchni. Roślina może w ten sposób zmienić kształt przekroju bez konieczności proporcjonalnego rozciągania całej dojrzałej skórki. Brodawki także uczestniczą w zmianach geometrii pędu, ale ich układ daje inne możliwości odkształcenia niż ciągłe żebra. [Mauseth 2006] [Hernández-Hernández i wsp. 2011]
Żebra wpływają jednocześnie na oświetlenie i mechanikę pędu. Jedne fragmenty powierzchni są w danej chwili silnie nasłonecznione, inne zacienione. Wynik zależy od wysokości żeber, ustawienia pędu i osłony tworzonej przez ciernie. Stwierdzenie, że żebra służą wyłącznie zacienianiu albo wyłącznie magazynowaniu wody, pomija część ich funkcji. [Mauseth 2006] [Hernández-Hernández i wsp. 2011]
W dawnej literaturze przedstawiano czasem żebra i brodawki jako kolejne stopnie jednej drogi przemian prowadzącej przez współczesne rodzaje. Porównanie kształtów nie odtwarza jednak samo w sobie historii ewolucyjnej. Współczesne gatunki są końcami rozgałęziającego się drzewa pokrewieństwa, a nie ustawionym obok siebie szeregiem przodków i potomków. [Mauseth 2006] [Hernández-Hernández i wsp. 2011]
Odczytywanie budowy rośliny w kolekcji
Przy obserwacji rośliny warto oddzielić cechy trwałe od zmian zachodzących w czasie. Układ areol i typ brodawek pomagają opisać organizację pędu. Stopień rozchylenia żeber może natomiast odzwierciedlać aktualne uwodnienie. Pokrój najmłodszego przyrostu mówi także o warunkach, w których powstawał. Wydłużony, słabo wybarwiony fragment należy więc porównać ze starszymi odcinkami oraz z historią stanowiska. [Mauseth 2006] [Fleischer i Schütz 1978] [1-WWW]
Z samej miękkości pędu nie wynika jednoznaczna diagnoza. Może ona towarzyszyć zużywaniu zapasów, sezonowym zmianom uwodnienia albo uszkodzeniu tkanek i korzeni. Dopiero zestawienie anatomii z fizjologią, porą roku i warunkami podłoża pozwala sensownie zinterpretować obserwację. Temu powiązaniu służą dalsze opracowania o CAM i systemie korzeniowym. [Mauseth 2006] [Fleischer i Schütz 1978] [1-WWW]
Tkanki areoli i regeneracja po ochłodzeniu
Merystemy pąków pachwinowych areoli mogą zachować żywotność przy temperaturze silniej uszkadzającej miękisz asymilacyjny. Zutta i współautorzy porównali tkanki trzech uprawianych kaktusów po 100 dniach w 10/5°C. U Opuntia robusta LT₅₀ wynosiło −8,8 ± 0,4°C dla miękiszu i −11,2 ± 0,4°C dla merystemu. Podano średnie ± błąd standardowy dla pięciu roślin po godzinnej ekspozycji. Próbki merystemu pochodziły z areoli, co trzeba odróżnić od badania głównego wierzchołka wzrostu. [Zutta i wsp. 2011]
Większa tolerancja pąków jest jedną z możliwych podstaw odrastania po uszkodzeniu powierzchni pędu. Przeżycie komórek w teście nie wystarcza jednak do wykazania późniejszego odtworzenia całej rośliny. W doświadczeniach regeneracyjnych trzeba dodatkowo sprawdzić rozwój pąków i korzeni. Dane o merystemach i regeneracji. [Zutta i wsp. 2011] [Ishikawa i Gusta 1996]
Typy brodawek i przykłady gatunków
Kształt brodawek opisuje się niezależnie od ich zagęszczenia oraz budowy cierni. Krótkie stożki Mammillaria mammillaris, wydłużone brodawki M. longimamma i boczne spłaszczenie u M. compressa ilustrują odrębne cechy. Osiem plansz z przykładami i komentarzem do terminologii pozwala porównać je bez traktowania schematów jako klucza do oznaczania. [Britton i Rose 1923] [2-WWW] [2-WWW] [2-WWW]
Chlorenchyma trwałego liścia opuncjowatych
U Austrocylindropuntia subulata wałeczkowaty liść zawiera zewnętrzną strefę palisadową i wewnętrzną niepalisadową, obie aktywne asymilacyjnie i magazynujące wodę. W badanym materiale między nimi rozproszone były śluzowe idioblasty. Budowę liścia można zestawić z pomiarami jego dobowej wymiany CO₂, odróżniając dane anatomiczne od fizjologicznych. [Ozerova i Timonin 2020b]
Drewno cholli i przebudowa rany
Cylindropuntia imbricata tworzy ażurowe drewno o kilku skalach porowatości. U C. bigelovii i Opuntia ficus-indica zbadano natomiast rozwój bariery i perydermy przyrannej. O strukturze szkieletu opowiada opracowanie drewna cholli, a kolejne etapy regeneracji przedstawia artykuł Jak kaktus zamyka ranę. [Morankar i wsp. 2024][Mylo i wsp. 2020]
Nowe żebra w okolicy wierzchołka
W populacji Ferocactus acanthodes z Deep Canyon policzono żebra 100 losowo wybranych roślin. U 56% ich liczba w środkowej części pędu wynosiła 5, 8, 13 albo 21. Nowe żebra pojawiały się bliżej wierzchołka, a wartości pośrednie występowały przede wszystkim w tej strefie. Zmiana liczby żeber miała zatem etapowy przebieg związany ze wzrostem. Autorzy interpretowali ją jako sposób dostosowania geometrii większego pędu do zmian objętości podczas wahań uwodnienia. Mechanizm wyzwalający kolejne etapy pozostawał nieustalony. [Robberecht i Nobel 1983, s. 153–155]
Podstawą wyjaśnienia anatomii jest pełny tekst przeglądu Mausetha z 2006 roku oraz działy Budowa i Formy ze starej strony. Historyczne określenia zestawiono ze współczesnym opisem rozwoju. Schematy przedstawiają relacje między tkankami, bez zachowania proporcji ich grubości. Opis struktur cierniowych uzupełniono o unaczynioną nasadę glochidiów wydzielniczych według Silva i wsp. z 2020 roku.
Budowa, fizjologia i rozmnażanie kaktusów
[Autor nieustalony, Budowa, fizjologia i rozmnażanie kaktusów, b.d.f]
Materiały ze starszej strony, zachowane w prywatnym archiwum Konrada Szychowskiego. Obejmują budowę, fizjologię i rozmnażanie kaktusów.
Structure–Function Relationships in Highly Modified Shoots of Cactaceae
Mauseth J. D., Structure–Function Relationships in Highly Modified Shoots of Cactaceae, Annals of Botany, 2006, 98(5):901-926, doi: 10.1093/aob/mcl133
Przegląd opisuje budowę pędów kaktusów, areole oraz tkanki asymilacyjne i magazynujące. Wyjaśnia związki anatomii z fotosyntezą i gromadzeniem wody.
Kaktusy
[Fleischer Z., Schütz B., Kaktusy, Państwowe Wydawnictwo Rolnicze i Leśne, Warszawa, 1978, wyd. I, tłum. Kabiesz Z., Prajer Z.]
Państwowe Wydawnictwo Rolnicze i Leśne, Warszawa, wydanie I. Tłumaczenie — Zofia Kabiesz i Zbigniew Prajer. Podstawa historyczna i uprawowa. Nazwy oraz interpretacje aktualizowane osobno.
Structure and function of secretory glochids and nectar composition in two Opuntioideae (Cactaceae) species
Silva S. C. D. M., Machado S. R., Nepi M., Rodrigues T. M., Structure and function of secretory glochids and nectar composition in two Opuntioideae (Cactaceae) species, Botany, 2020, 98(8):425-437, doi: 10.1139/cjb-2020-0004
Praca porównuje glochidia czterech roślin Brasiliopuntia brasiliensis i pięciu Opuntia cochenillifera (w publikacji Nopalea cochenillifera). Mikroskopia, histochemia i HPLC opisują funkcję wydzielniczą oraz obecność drewna i łyka w nasadzie glochidiów.
Archiwalne zestawienia terminologii oraz schematy fizjologii, sukulentyzmu i rozmnażania
[Autor nieustalony, Archiwalne zestawienia terminologii oraz schematy fizjologii, sukulentyzmu i rozmnażania, b.d.a]
Zestaw tabel i ilustracji z prywatnego archiwum Konrada Szychowskiego. Obejmuje terminologię, fizjologię, sukulentyzm i rozmnażanie. Jedna z rycin odwołuje się do opracowania W. Nultscha z 1973 roku, co określa źródło tego rysunku, a nie datę całego zbioru.
Low- and High-Temperature Tolerance and Acclimation for Chlorenchyma versus Meristem of the Cultivated Cacti Nopalea cochenillifera, Opuntia robusta, and Selenicereus megalanthus
Zutta B. R., Nobel P. S., Aramians A. M., Sahaghian A., Low- and High-Temperature Tolerance and Acclimation for Chlorenchyma versus Meristem of the Cultivated Cacti Nopalea cochenillifera, Opuntia robusta, and Selenicereus megalanthus, Journal of Botany, 2011, 2011:347168, doi: 10.1155/2011/347168
Badanie porównuje żywotność miękiszu asymilacyjnego i merystemów pąków pachwinowych trzech uprawianych kaktusów. Obejmuje godzinną ekspozycję na niską temperaturę po różnych warunkach aklimatyzacji.
Freezing and heat tolerance of Opuntia cacti native to the Canadian prairie provinces
Ishikawa M., Gusta L. V., Freezing and heat tolerance of Opuntia cacti native to the Canadian prairie provinces, Canadian Journal of Botany, 1996, 74(12):1890-1895, doi: 10.1139/b96-226
Sezonowe badania materiału z Saskatchewan obejmują zamrażanie członów, późniejszą martwicę i regenerację. Porównują zahartowane człony zimowe z młodymi przyrostami.
The Cactaceae: Descriptions and Illustrations of Plants of the Cactus Family. Volume IV
[Britton N. L., Rose J. N., The Cactaceae: Descriptions and Illustrations of Plants of the Cactus Family. Volume IV, Carnegie Institution of Washington, Washington, 1923, tom IV]
Tom IV monografii z 1923 roku zawiera opisy kaktusów, w tym budowę brodawek i historyczne kombinacje nazw. Udostępniony egzemplarz pochodzi z prywatnego archiwum Konrada Szychowskiego.
Plants of the World Online — Royal Botanic Gardens, Kew
Nazwy przyjęte, synonimy i rozmieszczenie. Cytowanie przy taksonie prowadzi do jego rekordu.
Dostęp 2026-10-08.
Structure of the chlorenchyma in the persistent terete leaves of Austrocylindropuntia subulata (Muehl.) Backeb. (Cactaceae): anatomy beyond functional limitation
Ozerova L. V., Timonin A. C., Structure of the chlorenchyma in the persistent terete leaves of Austrocylindropuntia subulata (Muehl.) Backeb. (Cactaceae): anatomy beyond functional limitation, Wulfenia, 2020, 27:221-232
Analiza mikroskopowa trwałych, wałeczkowatych liści Austrocylindropuntia subulata. Opisuje zewnętrzny miękisz palisadowy i wewnętrzny miękisz niepalisadowy, śluzowe idioblasty oraz układ wiązek przewodzących. Dyskusja dotyczy łączenia asymilacji i magazynowania wody w tych samych tkankach.
Cholla cactus wood (Cylindropuntia imbricata): Hierarchical structure and micromechanical properties
Morankar S., Luktuke A., Nieto-Valeiras E., Mistry Y., Bhate D., Penick C. A., Chawla N., Cholla cactus wood (Cylindropuntia imbricata): Hierarchical structure and micromechanical properties, Acta Biomaterialia, 2024, 174:269-280, doi: 10.1016/j.actbio.2023.12.005
Tomografia, mikroskopia, nanoindentacja i modelowanie suchego drewna Cylindropuntia imbricata. Opracowanie opisuje strukturę od otworów szkieletu po ściany komórkowe oraz porównuje właściwości włókien i promieni drzewnych.
Self‐repair in cacti branches: Comparative analyses of their morphology, anatomy, and biomechanics
Mylo M. D., Krüger F., Speck T., Speck O., Self‐repair in cacti branches: Comparative analyses of their morphology, anatomy, and biomechanics, International Journal of Molecular Sciences, 2020, 21(13):4630, doi: 10.3390/ijms21134630
Porównanie gojenia kontrolowanych ran Cylindropuntia bigelovii i Opuntia ficus-indica przez 31 dni. Mikroskopia i próby zginania pokazują kolejne etapy powstawania bariery ochronnej, perydermy przyrannej i zmian sztywności pędów.
A Fibonacci Sequence in Rib Number for a Barrel Cactus
Robberecht R., Nobel P. S., A Fibonacci Sequence in Rib Number for a Barrel Cactus, Annals of Botany, 1983, 51(1):153-155, doi: 10.1093/oxfordjournals.aob.a086440
Praca opisuje liczbę i dodawanie żeber u Ferocactus acanthodes w Deep Canyon w Kalifornii. W próbie 100 losowo wybranych roślin zestawiono liczbę żeber z wysokością pędu i ich rozmieszczeniem pomiędzy podstawą a wierzchołkiem. Autorzy rozpoznali częste wartości ciągu Fibonacciego oraz fazy przejściowe. Powiązanie tego układu z rozwojem pędu i zmianami uwodnienia przedstawiono jako interpretację funkcjonalną.
Root Structure and Function
[Dubrovsky J. G., North G. B., Root Structure and Function, Cacti: Biology and Uses, University of California Press, Berkeley i Los Angeles, Nobel P. S. (red.), 2002, s. 41–56]
Rozdział przedstawia budowę i funkcjonowanie korzeni kaktusów. Omawia anatomię, pobieranie wody i przewodność hydrauliczną w zmieniających się warunkach uwodnienia.
Phylogenetic relationships and evolution of growth form in Cactaceae
Hernández-Hernández T., Hernández H. M., De-Nova J. A., Puente R., Eguiarte L. E., Magallón S., Phylogenetic relationships and evolution of growth form in Cactaceae, American Journal of Botany, 2011, 98(1):44-61, doi: 10.3732/ajb.1000129
Analiza molekularna przedstawia pokrewieństwo kaktusów i ewolucję form wzrostu. Rekonstrukcja wskazuje wielokrotne powstawanie podobnych pokrojów w różnych liniach.
Royal Horticultural Society
Poradniki uprawy i ochrony roślin. Zalecenia ogrodnicze czytane z uwzględnieniem gatunku i warunków uprawy.
Dostęp 2026-10-08.