Co zmienia się w merystemie
Merystem wierzchołkowy pędu zawiera komórki inicjujące kolejne odcinki osi i zawiązki organów. U kaktusów jego rozmiar i sposób rozmieszczania nowych zawiązków wiążą się z układem brodawek oraz żeber. Badania Carnegiea gigantea i Kroenleinia grusonii pokazują, że podczas rozwoju może zmieniać się liczba rzędów organów; zwiększanie liczby żeber samo w sobie nie oznacza patologii. To normalną zmienność trzeba odróżnić od trwałej zmiany geometrii strefy wzrostu. [Mauseth 2025] [Mauseth 2006]
Cristata: wzrost wzdłuż grzebienia
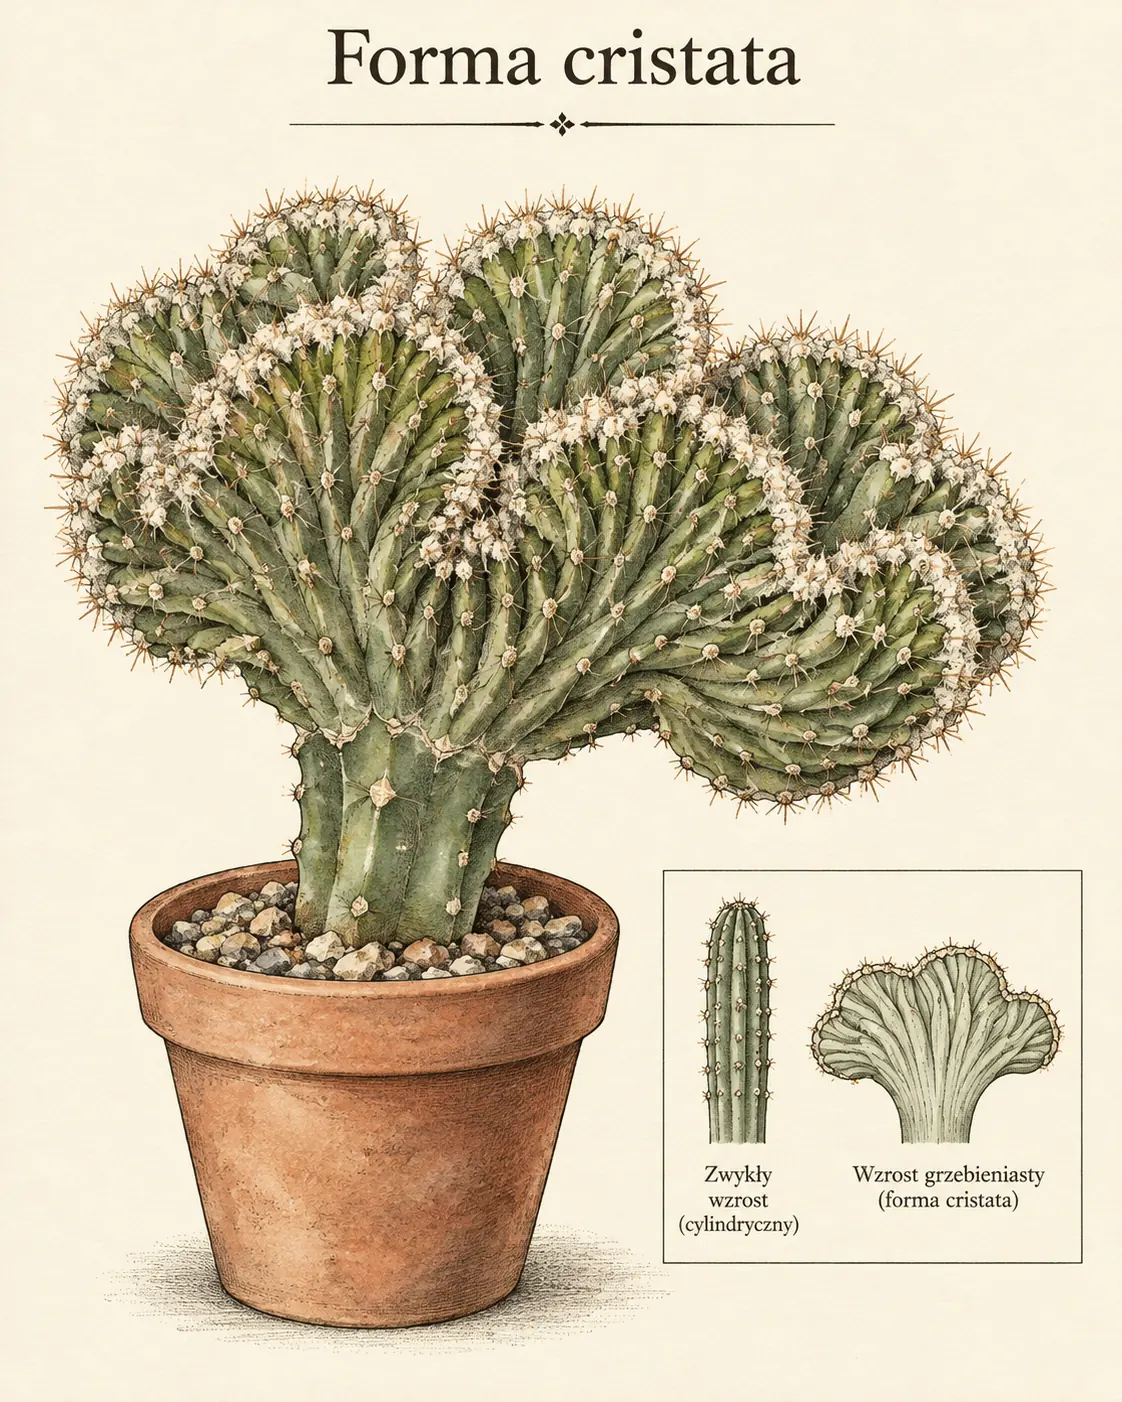
Forma cristata
Spłaszczony, pofałdowany pęd ilustruje narastanie wzdłuż wydłużonej strefy wierzchołkowej. [Iliev i Kitin 2011] [Fleischer i Schütz 1978]
Rysunek opisuje postać wzrostu. Nie identyfikuje gatunku ani przyczyny fasciacji.
Powiększ planszę ↗W formie grzebieniastej, określanej ogrodniczo jako cristata, okolica wierzchołkowa rozciąga się w wydłużoną strefę twórczą. Narastająca oś jest spłaszczona i może tworzyć wachlarz, falisty grzebień lub pofałdowany pas. Brodawki i areole nadal powstają, lecz ich rozmieszczenie wynika ze zmienionego kształtu merystemu. Zjawisko należy do fasciacji, czyli staśmienia. Nie polega na mechanicznym sklejeniu kilku prawidłowych dorosłych pędów. [Mauseth 2006] [Fleischer i Schütz 1978, s. 24–25]
Wielogłowość nie jest wystarczającym kryterium cristata. Rozwidlenie wierzchołka może dać dwa odrębne, regularnie rosnące pędy, podczas gdy trwały grzebień zachowuje wydłużoną strefę narastania. Również odrosty wybijające z areoli po uszkodzeniu szczytu są zwykłym rozgałęzianiem, dopóki ich własny wzrost pozostaje regularny. Rozstrzyga obserwacja kolejnych przyrostów, nie pojedynczego zarysu rośliny. [Mauseth 2006] [Hinz i Abramowicz 1986, s. 28–32]
Monstruosa: więcej niż jeden rodzaj nieregularności

Forma monstrualna
Nieregularne przyrosty i rozgałęzienia ilustrują formę monstrualną. [Fleischer i Schütz 1978] [Hinz i Abramowicz 1986]
Sformułowanie „brak symetrii” jest uproszczeniem; zmienione i regularne fragmenty mogą współistnieć.
Powiększ planszę ↗Określenie „forma monstrualna” obejmuje różne utrwalone odchylenia pokroju: nieregularny rytm wydłużania, guzowate przyrosty, odmienny układ żeber lub brodawek i nietypowe rozgałęzianie. Nie jest nazwą jednego mechanizmu rozwojowego. Roślina może zachowywać regularne fragmenty osi obok stref silnie zmienionych; stwierdzenie „brak symetrii” na ilustracji trzeba więc rozumieć opisowo. Cristata i monstruosa bywają łączone w handlu, lecz pierwsza nazwa wskazuje przede wszystkim grzebieniastą organizację wzrostu. [Mauseth 2006] [Hinz i Abramowicz 1986, s. 28–32]
Dopisek cristata lub monstruosa na etykiecie nie ustanawia automatycznie formalnej odmiany botanicznej ani jednego kultywaru. Podobny wygląd może wystąpić w niezależnych liniach. Najbardziej użyteczny zapis kolekcyjny zawiera przyjętą nazwę gatunku, określenie postaci wzrostu, pochodzenie rośliny i identyfikator klonu. Plansza przedstawia postać wzrostu; oznaczenie gatunku wymaga dodatkowych cech i informacji o pochodzeniu. [Turland i wsp. 2025] [Hinz i Abramowicz 1986, s. 28–32]
Przyczyna genetyczna, uraz czy zakażenie
W interpretacji form nietypowych trzeba rozdzielić zmianę programu wzrostu od czynnika, który ją wywołał. Zmiana może dotyczyć tylko części merystemu i być zachowana przy rozmnażaniu wegetatywnym. Uraz natomiast może zniszczyć dominujący szczyt i uruchomić nowe osie bez wywołania trwałej fasciacji. Samo pojawienie się grzebienia po uszkodzeniu nie jest dowodem konkretnej mutacji. Historyczne wyjaśnienia opierające wszystkie przypadki na jednej przyczynie są zbyt kategoryczne. [Mauseth 2006] [Hinz i Abramowicz 1986, s. 28–32]
Omar, Dewir i El-Mahrouk badali fasciowane sukulenty i wykryli DNA fitoplazm za pomocą zagnieżdżonej reakcji PCR oraz sekwencjonowania. Materiał obejmował jeden kaktus, opisany jako Opuntia cylindrica, oraz rośliny z innych rodzin. Zmieniał się także profil hormonów, ale nie jednakowo u wszystkich badanych gospodarzy. Wynik dokumentuje współwystępowanie zakażenia i zaburzonego wzrostu w określonym materiale; nie uprawnia do uznania każdej cristata za zakażoną ani do traktowania wszystkich badanych sukulentów jako kaktusów. [Omar i wsp. 2014]
Maliarenko i Mudrak znaleźli cząstki wirusopodobne w małej próbie dziewięciu materiałów obejmujących formy fasciowane oraz podkładki. Rozpoznanie oparto na morfologii cząstek i próbach biologicznych. Obecność takich cząstek także w zwykłych podkładkach oraz brak doświadczenia odtwarzającego staśmienie nie pozwalają przypisać wirusom powstania badanej cechy. Związek statystyczny, wykrycie patogenu i wykazanie przyczyny to różne poziomy dowodu. [Maliarenko i Mudrak 2013]
Geny i regulatory wzrostu: zakres dowodów
Przegląd Ilieva i Kitina pokazuje, że podobna fasciacja może powstawać różnymi drogami. U roślin modelowych zmiany w układzie genów CLAVATA, regulującym organizację merystemu, wiążą się z jego nadmiernym rozrostem. Podobny fenotyp uzyskiwano także przez oddziaływanie regulatorów wzrostu w kulturach in vitro. Autorzy omawiają również takie doświadczenia z Mammillaria elongata. Nie oznacza to, że u każdej kupionej cristata stwierdzono mutację CLAVATA albo że można wskazać jedną przyczynę na podstawie kształtu. [Iliev i Kitin 2011]
Wspólnym skutkiem jest zmiana rozmiaru i przestrzennej organizacji tkanki twórczej; dalsza anatomia zależy od gatunku i przebiegu rozwoju. Stwierdzenie w starszej książce, że staśmienia nigdy nie wywołano doświadczalnie, nie opisuje już całego stanu wiedzy. Należy jednak oddzielić wynik kontrolowanej kultury tkankowej od spontanicznej zmiany w kolekcji. [Iliev i Kitin 2011] [Hinz i Abramowicz 1986, s. 32]
Dziedziczenie i utrzymanie klonu
Zachowanie cechy w sadzonce nie dowodzi, że będzie ona przekazywana przez nasiona. Sadzonka odtwarza fragment zmienionej rośliny, natomiast potomstwo generatywne powstaje po mejozie i zapłodnieniu. Znaczenie ma to, które komórki niosą zmianę i czy uczestniczą w tworzeniu gamet. Nie należy jednak zastępować tego rozróżnienia przeciwną regułą, że cristata jest zawsze cechą wyłącznie nabytą. Taką ogólną deklarację z dawnego poradnika trzeba odrzucić bez danych o konkretnej linii i jej potomstwie. [Mauseth 2006] [Hinz i Abramowicz 1986, s. 32]
Szczepienie może pomóc utrzymać słabo rosnący zraz, ale nie usuwa jego przyczyny rozwojowej ani nie jest zabiegiem odwirusowania. Ocenę trwałości cechy prowadzi się w kolejnych sezonach, zapisując sektory grzebieniaste, nieregularne i powracające do zwykłego wzrostu. Gdy pojawiają się równocześnie nowe przebarwienia, zahamowanie wzrostu lub objawy na podkładce, trzeba oddzielnie zbadać zdrowotność materiału. [Maliarenko i Mudrak 2013] [Fleischer i Schütz 1978, s. 181–186]
Fasciacja w kulturach Ortegocactus
U Ortegocactus macdougallii (w części nowszych ujęć Cochemiea macdougallii) w kulturze tkankowej obserwowano pędy grzebieniaste i monstrualne przy połączeniu NAA 4,4 µM z BA 19,9 lub 26,6 µM. Przy niższym BA 13,3 µM uzyskiwano dłuższe pędy, a zwiększenie stężenia nie podnosiło istotnie ich liczby. Doświadczenie Arellano-Perusquíi i współautorów z 2013 r. dokumentuje związek postaci pędów z wariantem pożywki. Trwałość zmienionej postaci po aklimatyzacji i jej przyczyna molekularna wymagają osobnych badań. [Arellano-Perusquía i wsp. 2013, Arellano-Perusquía i wsp., s. 163–165, tabela 2; Breslin i wsp., s. 319][Breslin i wsp. 2021, Arellano-Perusquía i wsp., s. 163–165, tabela 2; Breslin i wsp., s. 319]
Mammillaria elongata. Regeneracja grzebienia i pędów zwykłych
W doświadczeniu Papafotiou i współautorów z 2001 r. Mammillaria elongata zwykła i grzebieniasta różniły się odpowiedzią na położenie wycinka oraz regulatory wzrostu. Eksplantaty pobierano z dwuletnich roślin matecznych utrzymywanych w nieogrzewanej szklarni. Kultura odbywała się na MS z sacharozą 20 g/l, w 25°C, przy szesnastogodzinnym fotoperiodzie i 37,5 µmol fotonów/m²/s. Każdy wariant obejmował 15 lub 18 eksplantatów. Doświadczenia powtórzono dwukrotnie, a tabele przedstawiają jedno z nich. [Papafotiou i wsp. 2001, s. 163–165]
U formy zwykłej eksplantaty pojedynczych brodawek z górnej części pędu tworzyły najpierw kalus, a następnie pędy. W wariancie NAA 1,07 µM i BA 22,19 µM po 60 dniach pędy powstały na 88% wycinków pobranych w październiku i 35% pobranych w lutym. Rośliny mateczne miały w tych miesiącach odmienne warunki szklarniowe, z podaną średnią temperaturą odpowiednio 22 i 10°C. Wynik wskazuje sezonową różnicę odpowiedzi tego materiału, obejmującą także wcześniejszy stan rośliny. [Papafotiou i wsp. 2001, s. 164, tab. 1]
U formy grzebieniastej wycinki samego grzebienia, oznaczone T, miały cztery brodawki. Wycinki z pasa do 1 cm poniżej niego, bT, miały trzy. Przy NAA 0,54 µM i BA 0,44 µM w październiku wszystkie eksplantaty T wytworzyły początkowo powiększony pęd grzebieniasty, podczas gdy tę odpowiedź miało 25% bT. Na 53% bT pojawiał się natomiast bezpośrednio pęd zwykły. Miejsce pobrania miało więc znaczenie dla uzyskanego kierunku wzrostu. [Papafotiou i wsp. 2001, s. 164–165, tab. 2a]
Po przeniesieniu powiększonych grzebieni na podstawowe MS powstawały pędy obu postaci. Także kalus pochodzący z grzebieniastej rośliny regenerował mieszaninę pędów zwykłych i grzebieniastych, często z objawami nadmiernego uwodnienia. Dla pędów grzebieniastych krótszych niż 1 cm ukorzenienie wynosiło 67% przy IBA 0,98 µM, a dalsza aklimatyzacja uprzednio ukorzenionych pędów 90–100%. Po dwóch latach około 80% otrzymanych grzebieniastych roślin zachowywało tę postać, u pozostałych pojawiały się także zwykłe pędy. Dokładnej liczebności tej końcowej kohorty nie podano. [Papafotiou i wsp. 2001, s. 165–167]
Doświadczenie pokazuje zależność formy potomnych pędów od regionu rośliny oraz przebiegu regeneracji. Hipoteza lokalnej regulacji hormonalnej w obrębie wydłużonego merystemu jest zgodna z częścią obserwacji, lecz w tej pracy nie mierzono endogennych hormonów ani zmian DNA. Wyniki dotyczą rozmnażania istniejącego materiału cristata i jego dalszego rozwoju. Dziedziczenie przez nasiona i pierwotna przyczyna staśmienia wymagają odrębnych danych. [Papafotiou i wsp. 2001, s. 167]
Opracowanie na podstawie wskazanych badań i udostępnionych fragmentów książek. Dawne nazwy i zalecenia odróżniono od aktualnych ustaleń. Zakres dostępu do każdej publikacji podano w bibliografii.
Constant distance between leaf initiation sites permits non-destructive analysis of apical meristem activity during cactus shoot growth
Mauseth J. D., Constant distance between leaf initiation sites permits non-destructive analysis of apical meristem activity during cactus shoot growth, Annals of Botany, 2025, 136(1):229-241, doi: 10.1093/aob/mcaf085
Badanie analizuje organizację merystemu i rozmieszczanie organów podczas wzrostu dwóch gatunków kaktusów. Łączy aktywność wierzchołka ze zmianami organizacji żeber.
Cactus viruses in fasciated plants
Maliarenko V. M., Mudrak T. P., Cactus viruses in fasciated plants, Biologija, 2013, 59(2):213-218, doi: 10.6001/biologija.v59i2.2754
Artykuł analizuje dziewięć próbek roślin fasciowanych i podkładek pod kątem obecności wirusów. Rozpoznanie cząstek opiera się na morfologii i próbach biologicznych.
Molecular identification of phytoplasmas in fasciated cacti and succulent species and associated hormonal perturbation
Omar A. F., Dewir Y. H., El-Mahrouk M. E., Molecular identification of phytoplasmas in fasciated cacti and succulent species and associated hormonal perturbation, Journal of Plant Interactions, 2014, 9(1):632-639, doi: 10.1080/17429145.2014.882421
Praca zestawia sekwencje fitoplazm i profile hormonów w czterech sukulentach. Jeden z badanych gatunków należał do Cactaceae.
Structure–Function Relationships in Highly Modified Shoots of Cactaceae
Mauseth J. D., Structure–Function Relationships in Highly Modified Shoots of Cactaceae, Annals of Botany, 2006, 98(5):901-926, doi: 10.1093/aob/mcl133
Przegląd opisuje budowę pędów kaktusów, areole oraz tkanki asymilacyjne i magazynujące. Wyjaśnia związki anatomii z fotosyntezą i gromadzeniem wody.
Kaktusy
[Fleischer Z., Schütz B., Kaktusy, Państwowe Wydawnictwo Rolnicze i Leśne, Warszawa, 1978, wyd. I, tłum. Kabiesz Z., Prajer Z.]
Państwowe Wydawnictwo Rolnicze i Leśne, Warszawa, wydanie I. Tłumaczenie — Zofia Kabiesz i Zbigniew Prajer. Podstawa historyczna i uprawowa. Nazwy oraz interpretacje aktualizowane osobno.
Uprawa kaktusów
[Hinz S., Abramowicz M., Uprawa kaktusów, Wydawnictwo Glob, Szczecin, 1986, s. 28–32, 89–112 (udostępnione fragmenty)]
Poradnik obejmuje budowę kaktusów, formy wzrostu, rozmnażanie, warunki uprawy i ochronę roślin. Udostępnione fragmenty opisują między innymi formy grzebieniaste i monstrualne, zimotrwałość oraz rozpoznawanie uszkodzeń i chorób. Zalecenia ochrony roślin dokumentują praktykę z okresu wydania książki.
International Code of Nomenclature for algae, fungi, and plants (Madrid Code)
[Turland N. J., Wiersema J. H., Barrie F. R., Gandhi K. N., Gravendyck J., Greuter W., Hawksworth D. L., Herendeen P. S., Klopper R. R., Knapp S., Kusber W. H., Li D. Z., May T. W., Monro A. M., Prado J., Price M. J., Smith G. F., Zamora Señoret J. C. (red.), International Code of Nomenclature for algae, fungi, and plants (Madrid Code), Regnum Vegetabile, University of Chicago Press, Chicago, 2025, tom 162]
Aktualne międzynarodowe zasady nazw naukowych roślin. Wydanie opublikowane 21 lipca 2025 roku zastąpiło Kodeks Shenzhen. W spisie wymieniono cały komitet redakcyjny wydania. Kodeks ustala reguły nomenklatury, a nie jedyną dopuszczalną klasyfikację pokrewieństwa.
Origin, morphology, and anatomy of fasciation in plants cultured in vivo and in vitro
Iliev I., Kitin P., Origin, morphology, and anatomy of fasciation in plants cultured in vivo and in vitro, Plant Growth Regulation, 2011, 63(2):115-129, doi: 10.1007/s10725-010-9540-3
Przegląd porównuje przyczyny i anatomiczne postacie fasciacji. Omawia zmiany genetyczne oraz reakcje na warunki środowiska i regulatory wzrostu.
Effect of growth regulators on the organogenesis and multiplication of Ortegocactus macdougallii Alexander
Arellano-Perusquía A., López-Peralta M. C. G., Chablé-Moreno F., Estrada-Luna A. A., Effect of growth regulators on the organogenesis and multiplication of Ortegocactus macdougallii Alexander, Propagation of Ornamental Plants, 2013, 13(4):160-167
Doświadczenia mikrorozmnażania Ortegocactus macdougallii z brodawek dorosłych roślin. Autorzy obserwują uruchomienie merystemów areoli i powstawanie przybyszowych pąków poza areolami. Porównują kombinacje BA i NAA podczas inicjacji i namnażania oraz rozcieńczenie pożywki MS i IBA podczas ukorzeniania. Większe dawki BA wiązały się z fasciacją części pędów, a najwyższy udział ukorzenionych eksplantatów wyniósł około 75% po 50 dniach.
Molecular phylogeny of the Mammilloid clade (Cactaceae) resolves the monophyly of Mammillaria
Breslin P. B., Wojciechowski M. F., Majure L. C., Molecular phylogeny of the Mammilloid clade (Cactaceae) resolves the monophyly of Mammillaria, Taxon, 2021, 70(2):308-323, doi: 10.1002/tax.12451
Rekonstrukcja filogenezy kladu mammilloidowego z regionu dużej pojedynczej kopii genomu plastydowego, z użyciem największej wiarygodności, największej parsymonii i wnioskowania bayesowskiego. Próba obejmuje 88 okazów reprezentujących 78 taksonów, a analizę wspierają rekonstrukcje stanów cech morfologicznych. Autorzy proponują nowe granice Mammillaria, Cochemiea i Coryphantha oraz omawiają odrębne położenie Mammillaria sphacelata, obecnie Oehmea sphacelata.
In vitro plant regeneration of Mammillaria elongata normal and cristate forms
Papafotiou M., Balotis G. N., Louka P. T., Chronopoulos J., In vitro plant regeneration of Mammillaria elongata normal and cristate forms, Plant Cell, Tissue and Organ Culture, 2001, 65(2):163-167, doi: 10.1023/A:1010601328667
Porównanie regeneracji form zwykłych i grzebieniastych Mammillaria elongata z eksplantatów brodawek. Autorzy badają położenie wycinka, termin pobrania, stężenia NAA i BA, regenerację bezpośrednią i przez kalus oraz ukorzenianie. Dwuletnia obserwacja pokazuje utrzymanie grzebienia u części roślin oraz pojawianie się pędów zwykłych. Praca omawia lokalną organizację wzrostu i hipotetyczny udział regulacji hormonalnej w fasciacji.


