Od brodawki do nowego pędu
Ortegocactus macdougallii jest jedynym gatunkiem rodzaju przyjmowanym obecnie przez Plants of the World Online. Jego naturalny zasięg znajduje się w Oaxaca. W publikacjach stosujących szeroko ujętą Cochemiea spotyka się nazwę Cochemiea macdougallii. Wyniki wcześniejszej pracy Arellano-Perusquíi i współautorów dotyczą tej samej rośliny. Ogłoszone w 2013 r. doświadczenie śledziło reakcję niewielkich fragmentów pędu na regulatory wzrostu, następnie namnażanie uzyskanych pędów i tworzenie korzeni. Te etapy oceniano odrębnie, ponieważ odpowiedź prowadząca do powstania pąka różniła się od warunków sprzyjających jego dalszemu wzrostowi i ukorzenieniu. [Arellano-Perusquía i wsp. 2013, Arellano-Perusquía i wsp., s. 160–161; Breslin i wsp., s. 319; POWO, karty rodzaju i gatunku][2-WWW][2-WWW][Breslin i wsp. 2021, Arellano-Perusquía i wsp., s. 160–161; Breslin i wsp., s. 319; POWO, karty rodzaju i gatunku]
Materiał pochodził z siedmioletnich roślin zakupionych w szkółce. Przez rok utrzymywano je w szklarni, po czym pobierano młode pędy długości 0,5–1,5 cm. Po odkażeniu wycinano pojedyncze brodawki lub fragmenty z kilkoma brodawkami, obejmujące od jednej do trzech areoli. Taki eksplant zawierał już miejsca, w których występują merystemy areolowe, oraz tkanki położone pomiędzy nimi. Autorzy mogli więc porównać aktywację istniejących punktów wzrostu z pojawieniem się pąków w innych częściach fragmentu. [Arellano-Perusquía i wsp. 2013, s. 161, Plant material, Micropropagation]
Wspólne środowisko kultury, zmienne regulatory
Pożywką podstawową była MS, opracowana przez Murashige i Skooga. Wszystkie jej warianty zawierały 5% sacharozy i 0,7% agaru. pH ustalano na 5,7. Kultury utrzymywano w temperaturze 27 ± 3°C i szesnastogodzinnym dniu pod białymi lampami fluorescencyjnymi, przy gęstości strumienia fotonów fotosyntetycznie czynnych około 50 µmol m−2 s−1. Są to warunki wspólne dla doświadczenia z tkankami rosnącymi w pojemnikach na pożywce z cukrem. Podane dalej reakcje odnoszą się do tego środowiska i użytego materiału. [Arellano-Perusquía i wsp. 2013, s. 161, Culture conditions]
W pierwszym etapie zestawiono cytokininę BA, czyli N6-benzyloadeninę, z auksyną NAA, kwasem α-naftylooctowym. Regulatory podawano pojedynczo lub łącznie w stężeniach z szeregu 0; 1,3; 4,4; 13,3 µM. Na wariant przypadało sześć eksplantów, a odpowiedź oceniano po 116 dniach. Rejestrowano powstawanie kalusa, pędów oraz korzeni. Ograniczona początkowa liczba fragmentów rośliny nadaje temu etapowi charakter poszukiwania warunków umożliwiających ustanowienie kultury. [Arellano-Perusquía i wsp. 2013, s. 161–162, Micropropagation, Results]
Kalus, aktywacja areoli i organogeneza bezpośrednia
Warianty z NAA wywoływały tworzenie kalusa. Początkowo był on miękki, kruchy, czerwony lub zielony. Później stawał się twardy i zwarty oraz rósł powoli. Wytworzenie tej tkanki świadczyło o reakcji eksplantatu na pożywkę, podczas gdy uzyskanie pędu stanowiło kolejny, osobno obserwowany wynik. Pędy pojawiły się tylko przy połączeniu BA 13,3 µM z NAA 1,3 albo 4,4 µM. W tych dwóch wariantach cztery eksplanty utworzyły łącznie 17 pędów. Sama BA w użytych stężeniach nie pobudziła pąków areolowych do wzrostu. [Arellano-Perusquía i wsp. 2013, s. 162–163, Results, tabela 1]
Oględziny stereoskopowe ujawniły dwie drogi tworzenia pędów. Jedną było uruchomienie merystemów obecnych w areolach. Drugą stanowiło pojawianie się pąków przy brzegach i podstawie eksplantatu oraz pomiędzy brodawkami, w miejscach pozbawionych areoli. Z tych zawiązków rozwijały się pędy z drobnymi brodawkami i typową dla młodych roślin barwą. Autorzy opisali drugi przebieg jako bezpośrednią organogenezę przybyszową, opierając rozpoznanie na miejscu pojawiania się pąków i ich rozwoju. [Arellano-Perusquía i wsp. 2013, s. 162–165, ryc. 1B–G, Results, Discussion]
Rozdzielenie tych dróg ma znaczenie dla rozmnażania klonalnego. Pęd pochodzący z areoli wykorzystuje istniejący merystem, a pęd przybyszowy tworzy nowy punkt wzrostu. Publikacja dokumentuje ich lokalizację i postać widoczną w kulturze. Pochodzenie nowych pąków z określonych komórek oraz wierność genetyczna otrzymanych roślin stanowią odrębne pytania, wymagające badań anatomicznych lub molekularnych. Z tego powodu określenie sposobu organogenezy należy powiązać z obserwacjami, które rzeczywiście przeprowadzono. [Arellano-Perusquía i wsp. 2013, s. 162–165, ryc. 1, Discussion]
Namnażanie, liczba pędów i ich długość
W etapie namnażania utrzymano NAA na poziomie 4,4 µM i porównano trzy stężenia BA wynoszące 13,3; 19,9; 26,6 µM. Każdy wariant obejmował osiem naczyń po sześć eksplantów. Doświadczenie powtórzono dwukrotnie, a wyniki odczytano po 110 dniach. Średnia liczba pędów na eksplant wynosiła około pięciu do sześciu. Porównanie statystyczne nie wykazało różnicy między tymi wariantami ani w liczbie pędów, ani w ich świeżej masie. Różniła się natomiast długość. Najniższe z badanych tu stężeń BA dało dłuższe pędy. [Arellano-Perusquía i wsp. 2013, s. 161, 163–164, tabela 2]
| BA (µM) | Pędy na eksplant | Długość pędu (mm) | Świeża masa (mg) |
|---|---|---|---|
| 13,3 | 5,67 ± 0,49 | 4,78 ± 0,17 | 340,48 ± 47,06 |
| 19,9 | 5,83 ± 0,65 | 3,93 ± 0,26 | 388,62 ± 36,79 |
| 26,6 | 5,33 ± 0,72 | 3,67 ± 0,15 | 327,64 ± 26,17 |
Wariant BA 13,3 µM wraz z NAA 4,4 µM powodował ponadto tworzenie korzeni średnio u 38,83% namnażanych eksplantów. Liczba korzeni wynosiła jednak tylko 1,25 na eksplant. Przy dwóch wyższych stężeniach BA korzeni w tym etapie nie stwierdzono. Wynik pokazuje przesunięcie odpowiedzi rozwojowej w obrębie tych samych kombinacji regulatorów. Do dalszej oceny ukorzeniania przeniesiono więc pędy na inne pożywki, o obniżonej zawartości składników MS. [Arellano-Perusquía i wsp. 2013, s. 164, tabela 3]
Fasciacja przy wyższych stężeniach BA
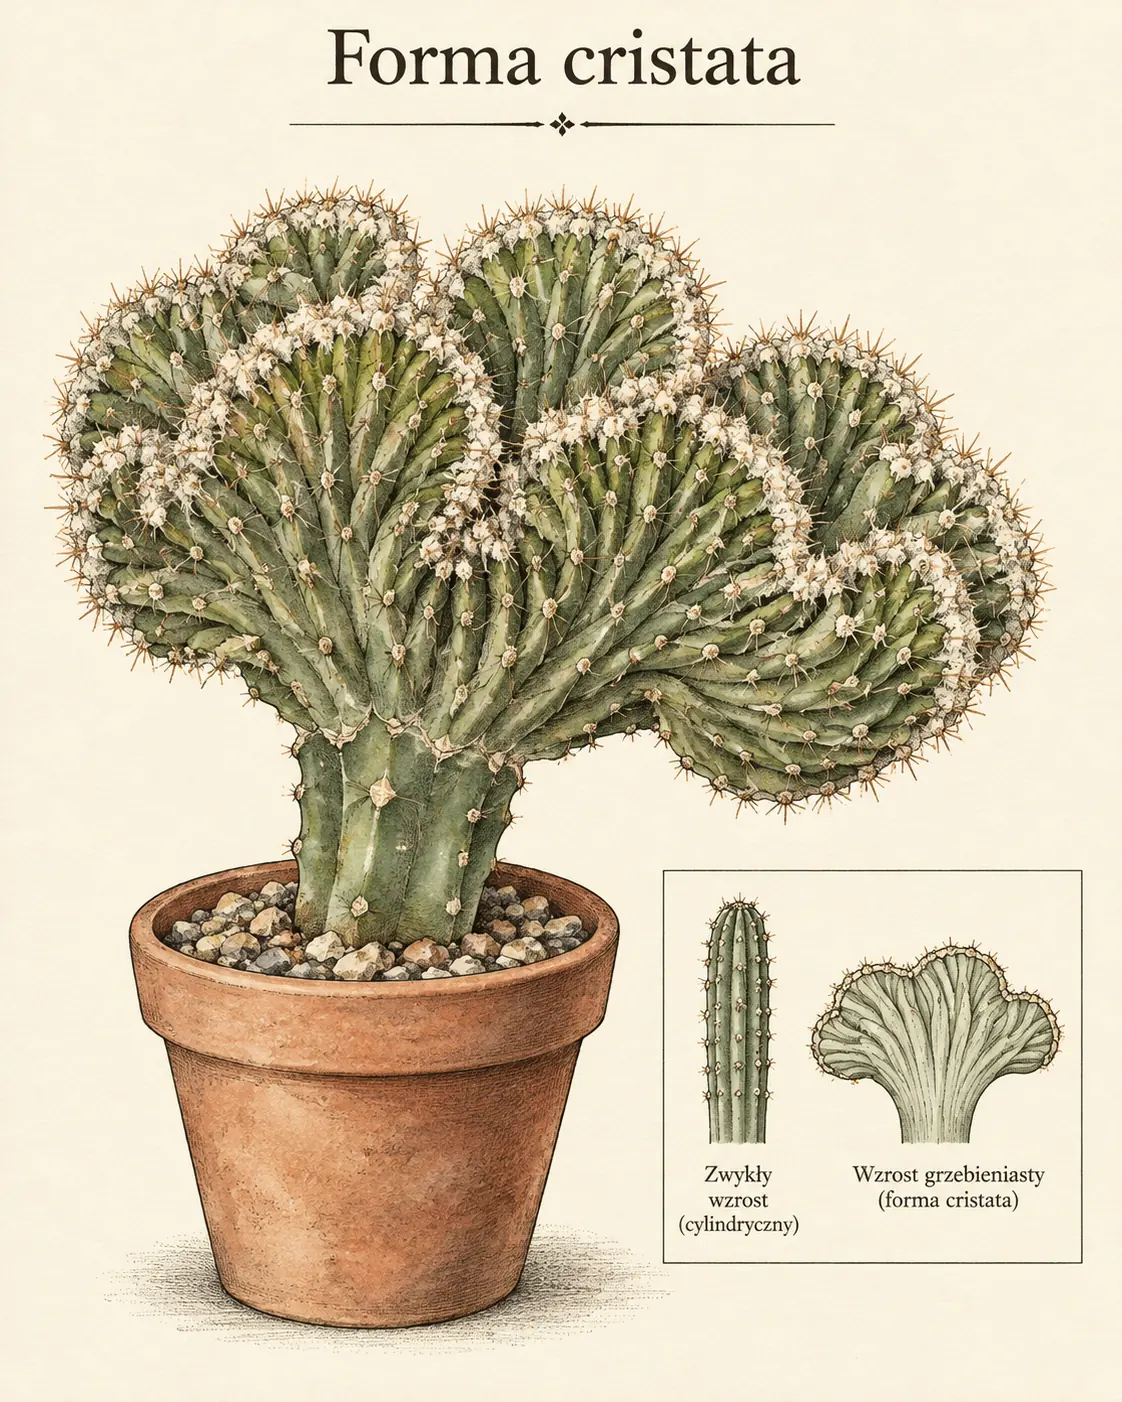
Przy BA 19,9 i 26,6 µM autorzy obserwowali, obok pędów o zwykłej postaci, również pędy grzebieniaste i monstrualne, określane w pracy jako fasciowane. Ich pojawienie się przy dwóch wyższych stężeniach cytokininy stanowi ważny wynik jakościowy. Większa dawka BA nie zwiększyła istotnie liczby namnażanych pędów, a współwystępowała ze zmianami ich organizacji i mniejszą przeciętną długością. Ocena sprawności rozmnażania obejmuje zatem zarówno liczbę pędów, jak i ich postać oraz dalszy rozwój. [Arellano-Perusquía i wsp. 2013, s. 163–165, tabela 2, Discussion]
W dyskusji autorzy odnoszą fasciację do oddziaływania regulatorów wzrostu i do ogólnie znanych mechanizmów regulujących merystem, w tym genów rodziny CLAVATA. Ten komentarz jest interpretacją na podstawie wcześniejszej literatury. W doświadczeniu z O. macdougallii nie oznaczano ekspresji tych genów, trwałości cechy po przeniesieniu roślin do podłoża ani udziału zmian genetycznych. Udokumentowane jest wystąpienie odmiennych form pędów w określonych wariantach kultury. Ich przyczyna molekularna i późniejsza stabilność pozostają zagadnieniami do sprawdzenia. [Arellano-Perusquía i wsp. 2013, s. 164–165, Discussion]
Oddzielny etap tworzenia korzeni
Ukorzenianie badano przez 50 dni w czterech wariantach. Stosowano jedną czwartą lub połowę stężenia pożywki MS bez regulatorów oraz połowę MS z IBA, kwasem indolilo-3-masłowym, w stężeniu 1,6 albo 4,9 µM. Każdy wariant obejmował osiem naczyń po trzy eksplanty. Zawiązki korzeni były widoczne po około 30 dniach, a po kolejnych 20 dniach wyraźnie wydłużone. Korzenie tworzyły się bez poprzedzającego ich powstawanie kalusa. [Arellano-Perusquía i wsp. 2013, s. 161, 164, Rooting, Results]
| Pożywka | Tworzące korzenie (%) | Liczba korzeni | Długość korzenia (mm) |
|---|---|---|---|
| ¼ MS, bez regulatorów | 58,34 ± 8,34 | 4,17 ± 0,48 | 11,32 ± 1,95 |
| ½ MS, bez regulatorów | 37,49 ± 11,68 | 5,00 ± 1,37 | 9,96 ± 3,05 |
| ½ MS + IBA 1,6 µM | 45,83 ± 6,11 | 6,33 ± 0,77 | 8,99 ± 0,91 |
| ½ MS + IBA 4,9 µM | 75,03 ± 5,45 | 9,92 ± 1,91 | 8,37 ± 1,56 |
Największy średni odsetek pędów tworzących korzenie i największą ich liczbę otrzymano na połowie MS z IBA 4,9 µM. W porównaniu z połową MS bez regulatorów wzrost odsetka ukorzenionych pędów był statystycznie istotny. Wariant z jedną czwartą MS częściowo nakładał się na obie grupy w teście Tukeya. Podobnie IBA 1,6 µM nie dawał jednoznacznej przewagi nad obiema kontrolami. Średnia długość korzeni pozostawała statystycznie podobna we wszystkich wariantach. Stężenie podnoszące udział ukorzenionych pędów i liczbę ich korzeni nie zwiększyło więc wykazanej długości korzenia. [Arellano-Perusquía i wsp. 2013, s. 164, tabela 4, litery grup jednorodnych testu Tukeya]
Oryginalna tabela 4 zawiera przy IBA drukowaną jednostkę mM, natomiast opis metody ukorzeniania i odpowiadający jej tekst wyników podają µM. W powyższym zestawieniu zachowano jednostkę z opisu doświadczenia. Rozbieżność dotyczy czynnika tysiąc, ma więc znaczenie dla odczytania protokołu. Przedstawione wartości opisują badanie laboratoryjne i jego zakres porównania pożywek. [Arellano-Perusquía i wsp. 2013, s. 161, Rooting; s. 164, tekst wyników i tabela 4]
Znaczenie dla rozmnażania i zachowania zasobów
Praca dokumentuje uzyskanie nowych pędów z fragmentów roślin szkółkowych oraz ich ukorzenienie w kulturze. Materiał może powstawać przez aktywację areoli i przez bezpośrednią organogenezę przybyszową, a dobór regulatorów wpływa na udział tych odpowiedzi oraz postać pędów. Dla gatunku o wąskim zasięgu taki sposób namnażania daje podstawę do rozwijania uprawnego źródła roślin. Ocena przydatności w ochronie wymaga również reprezentacji różnych roślin wyjściowych, zachowania ich tożsamości i kontroli kolejnych etapów rozwoju. [Arellano-Perusquía i wsp. 2013, s. 160–161, 165, Introduction, Discussion]
Punktem końcowym opisanych doświadczeń była roślina z pędem i korzeniami uzyskanymi in vitro. Aklimatyzacja i dalszy wzrost poza naczyniem stanowią odrębny etap rozmnażania. [Arellano-Perusquía i wsp. 2013, s. 161, 164–165, zakres metody i wyniki ukorzeniania]
Effect of growth regulators on the organogenesis and multiplication of Ortegocactus macdougallii Alexander
Arellano-Perusquía A., López-Peralta M. C. G., Chablé-Moreno F., Estrada-Luna A. A., Effect of growth regulators on the organogenesis and multiplication of Ortegocactus macdougallii Alexander, Propagation of Ornamental Plants, 2013, 13(4):160-167
Doświadczenia mikrorozmnażania Ortegocactus macdougallii z brodawek dorosłych roślin. Autorzy obserwują uruchomienie merystemów areoli i powstawanie przybyszowych pąków poza areolami. Porównują kombinacje BA i NAA podczas inicjacji i namnażania oraz rozcieńczenie pożywki MS i IBA podczas ukorzeniania. Większe dawki BA wiązały się z fasciacją części pędów, a najwyższy udział ukorzenionych eksplantatów wyniósł około 75% po 50 dniach.
Plants of the World Online — Royal Botanic Gardens, Kew
Nazwy przyjęte, synonimy i rozmieszczenie. Cytowanie przy taksonie prowadzi do jego rekordu.
Dostęp 2026-10-08.
Molecular phylogeny of the Mammilloid clade (Cactaceae) resolves the monophyly of Mammillaria
Breslin P. B., Wojciechowski M. F., Majure L. C., Molecular phylogeny of the Mammilloid clade (Cactaceae) resolves the monophyly of Mammillaria, Taxon, 2021, 70(2):308-323, doi: 10.1002/tax.12451
Rekonstrukcja filogenezy kladu mammilloidowego z regionu dużej pojedynczej kopii genomu plastydowego, z użyciem największej wiarygodności, największej parsymonii i wnioskowania bayesowskiego. Próba obejmuje 88 okazów reprezentujących 78 taksonów, a analizę wspierają rekonstrukcje stanów cech morfologicznych. Autorzy proponują nowe granice Mammillaria, Cochemiea i Coryphantha oraz omawiają odrębne położenie Mammillaria sphacelata, obecnie Oehmea sphacelata.